导读
滨海与深海生态环境研究中心团队在Applied Energy上发表了题为:“Behaviours of methane metabolism and community dynamics of methane anaerobic oxidation microbes on carbonate rocks with long-term cultivation in cold seep environment”的研究论文。该研究采用自主研制的高压反应釜对深海冷泉碳酸盐附着微生物进行长周期低温高压环境模拟富集培养实验,揭示了碳酸盐表面微生物在富集过程中微生物主要类群的变化、微生物对甲烷的利用途径的选择,以及微生物对碳酸盐矿化的潜在影响。
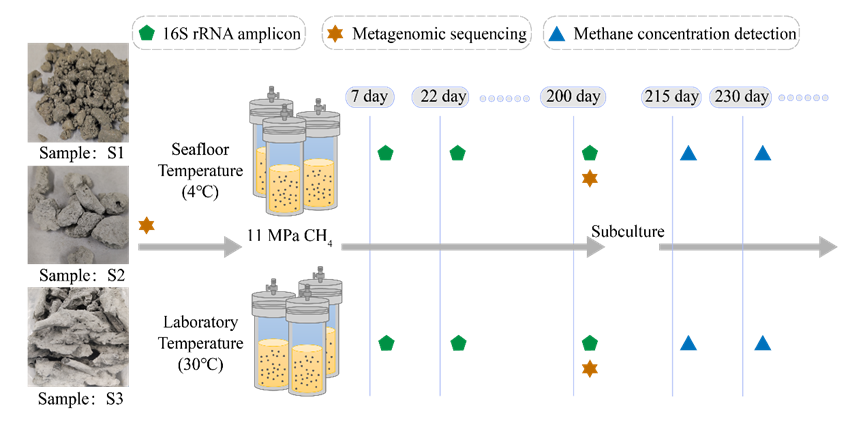
图1 碳酸岩表面微生物富集实验
✦摘要✦
冷泉的碳酸盐岩表面存在大量参与AOM反应的微生物。研究这些微生物对甲烷的代谢和转化,有助于推进深海甲烷能源的开发和利用。以往的研究主要集中在冷泉环境下碳酸盐岩微生物群落的原位调查,而微生物群落变化引起的碳酸盐岩矿化动态平衡与碳酸盐岩样品中甲烷消耗特征尚不清楚。本研究以甲烷为唯一碳源,在高压下富集培养碳酸盐样品,并定期监测群落动态。结果表明甲烷消耗和代谢途径在影响群落演替和碳酸盐成矿作用中起着至关重要的作用。AOM过程与以ANME-2c为主的硫酸盐还原和硝酸盐还原相结合,有利于碳酸钙的沉淀。相反,以ANME-1为主的乙酸生成过程可能会阻碍碳酸钙矿化的效率。此外,在富集过程中,细菌群通过胞外酶的产生、有机酸途径和碳酸酐酶途径的表达对碳酸盐矿化的影响也不容忽视。这些发现强调了不同途径甲烷代谢在甲烷消耗动力学、深海微生物群落、碳酸盐动力学和海洋生物固碳过程中的重要意义。
✦引言✦
与二氧化碳相比,甲烷对全球气候变化的影响更大。在100年的时间里,它的全球变暖潜势是二氧化碳的28倍。甲烷被好氧和厌氧微生物氧化,使它们成为这种温室气体的重要汇。甲烷在好氧条件下的氧化主要发生在氧气和缺氧条件的交界面,这一过程导致全球甲烷排放量减少约600 Tg/年。海洋和大气之间的甲烷通量被硫酸盐依赖的AOM所减少,这是海洋环境中主要的甲烷去除机制。由硫酸盐驱动的AOM每单位溶解的无机碳(DIC)产生两个单位的碱度(Alk),反应方程如下: CH4 + SO42- ↔ HCO3- + HS- + H2O和2HCO3- + Ca2+ ↔ CaCO3 (s) + CO2 (aq) + H2O。根据反应方程,与碳酸钙相比,AOM过程提高了沉积孔隙水的饱和状态,有利于自生碳酸盐的沉淀。在冷渗环境中,约有10-20%的甲烷被AOM氧化成自生沉积物。据估计,这些沉积物占大陆架沉积物年碳酸盐岩聚集量的11-15% (11-15 Tmol/年)。
深海碳酸盐岩通常存在于活跃甲烷渗流区附近,被认为是甲烷氧化代谢过程的标志。自生碳酸盐经常在渗漏环境中发现并与AOM有关,表现出形式、大小和矿物学特征的差异。各种构造包括泥积层、结核、向水柱延伸的块状构造以及数百平方米的大型结构。这些自生碳酸盐和结核通常在沉积柱内或沉积-水界面处观察到。然而,现代和过去的甲烷渗漏碳酸盐经常表现出在海底溶蚀的迹象,如暴露在表面上的凹坑、孔洞和微蚀刻,这被认为是由好氧甲烷氧化、硫氧化或这两种过程的结合造成的。这些腐蚀的碳酸盐表面经常伴随着沉积物-水界面上含有硫氧化细菌的细菌垫。自生碳酸盐不仅是微生物群落的栖息地,也是代谢活跃的甲烷营养种群的宿主,这些种群在渗流区域的甲烷氧化中起着至关重要的作用。最近的研究表明,在渗碳酸盐上存在有活跃的大型动物和厌氧甲烷氧化微生物,它们具有导致自生碳酸盐形成的代谢通路。在渗流区碳酸盐沉积物中发现了大量的甲烷营养微生物和后生动物群落。这些生物在自生碳酸盐的形成中起着至关重要的作用。与甲烷氧化谱系相关的生物标志物和地球化学标记,如古细菌脂质、16S rRNA基因和同位素碳,已经在与渗漏相关的碳酸盐研究中被使用。通过模型计算,也推断出AOM产生溶解无机碳的代谢速率与碳酸盐降水之间的关系。然而,甲烷消耗和次生代谢物产生对碳酸盐微生物群落的长期影响,以及它们对碳酸盐生物矿化的影响,仍然知之甚少。以往的研究主要集中在冷渗环境下对碳酸盐岩黏附微生物群落的原位调查,而微生物与环境中的金属离子密切相互作用。一些金属是代谢所必需的,通过各种机制进入细胞,然后被纳入必要的代谢途径和生物合成。这一过程对矿物的形成和元素的再循环非常重要。
在本研究中,我们模拟原位压力条件对南海海马冷渗环境的碳酸盐样品进行了长周期的富集培养。这些实验旨在研究甲烷代谢动力学和这些碳酸盐表面微生物群落的动态变化,并评估微生物群落甲烷代谢的变化对碳酸盐的影响。
成果简介
01富集体系中甲烷氧化速率随时间的变化
通过定期采样评估富集系统内甲烷浓度的变化,发现在富集反应的30天内甲烷浓度迅速下降,随后消耗速度减慢(图2)。表明在甲烷作为唯一碳源的富集系统中,培养初期碳源物质缺乏导致了活跃的甲烷代谢活动。然而,随着甲烷转化为有机分子(如甲醇和乙酸)的过程在系统内累积,甲烷消耗的速度被抑制。富集系统内阳离子浓度的时间梯度分析表明,虽然铁和锰离子保持相对恒定,但钙、镁和钾离子的浓度在整个富集过程中不断升高。这一趋势表明,随着富集时间的延长,碳酸盐岩溶蚀作用比微生物活动引发的碳酸盐岩沉淀作用更占优势。
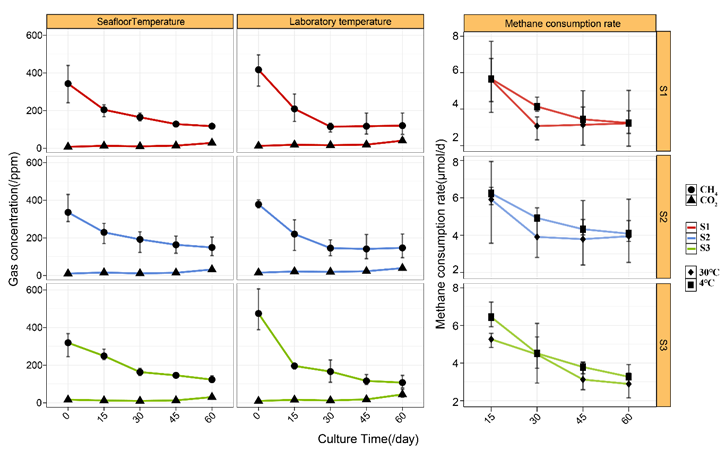
图2 甲烷浓度变化和甲烷消耗速率
02 富集培养过程中微生物群落的动态变化
16S rRNA测序结果表明,原位样品碳酸盐表面的微生物群落主要由甲烷氧化古菌组成,特别是ANME-2c和ANME-1b。(图3)在富集培养过程中,甲烷作为整个培养系统的唯一碳源,导致厌氧甲烷氧化微生物选择性富集。这是由于ANME群体中存在与AOM相关的基因,使它们能够优先于其他微生物群体进行甲烷能量代谢。在富集培养的初始阶段,ANME-2c可能占主导地位,这可能是由于其较高的甲烷利用率。ANME-2c可以通过厌氧氧化有效地将环境甲烷转化为含甲基甲酸酯和甲醇等碳源。这些碳源可以被微生物进一步利用来合成其他营养物质。然而,随后由于AOM和硫酸盐还原导致的系统中硫化物水平的增加抑制了微生物的生长,这可能解释了ANME-2c在富集培养中期的下降。相反,ANME-1b和ANME-2a-2b基因包含丰富的应激反应和防御基因。这些基因的功能多样性可能有助于培养过程中的丰度增加。甲烷厌氧氧化过程可能伴随着体系中硫酸盐的还原,导致反应体系向碱性条件转变。在碱性环境下,HCO3-与Ca2+的反应有利于碳酸盐矿物的形成。
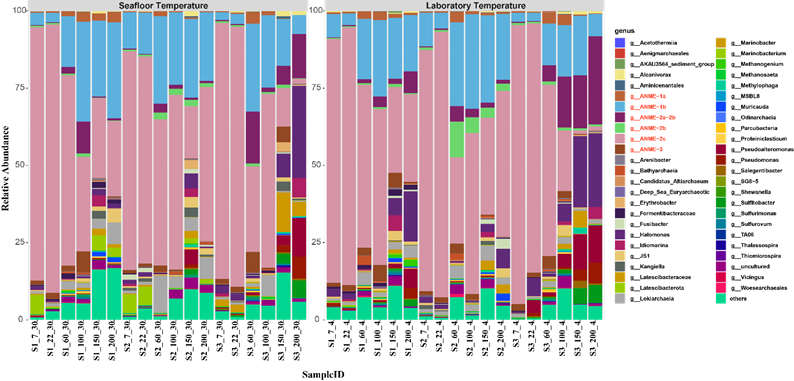
图3 富集过程中微生物属水平变化
PCoA分析显示,在整个富集过程中,微生物群落发生了明显的变化,可大致分为三个阶段:早期、中期和晚期(图4A)。与培养时间之间的差异相比,样品之间观察到的差异相对较小。为了研究温度和培养时间对组间差异的潜在影响,我们使用Lefse对不同培养温度下获得的样品进行了属水平的差异分析(图4B)。研究结果表明,不同的富集温度对甲烷氧化古菌的影响没有显著差异,温度主要影响对温度敏感的细菌群的丰度。例如,在4°C条件下,Psychrobacter和Polycyclovorans的丰度显著增加,而在30°C条件下,Gracilimonas、Bradymonadales、Geoalkalibacter和Tepidicaulis的丰度显著增加。
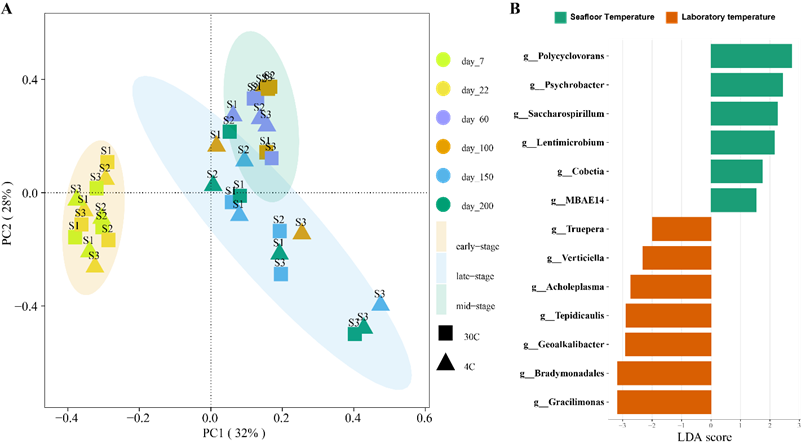
图4 A,不同时间点样品的微生物组成差异;B,不同温度条件下微生物属水平差异
03 富集过程中的主要代谢途径差异
利用BioBakery对质控后的序列进行注释,发现富集过程中高丰度代谢功能主要为:氨基酸、核酸和辅酶的生物合成。这表明了该系统微生物群落的活跃生长和代谢。富集温度的变化在生物合成和有机物分解方面导致代谢途径发生了明显的变化,但对甲烷代谢相关途径的影响微乎其微(图5)。值得注意的是,在富集培养之后,甲烷氧化为二氧化碳、醋酸和四氢甲烷蝶呤的途径的相对丰度降低。相反,富集后,甲醇氧化为二氧化碳的途径相对丰度增加了1.5倍,这表明当甲烷作为唯一的碳源时,甲烷氧化细菌可能会将甲烷转化甲醇,随后甲醇被系统内的其他微生物用作碳源。
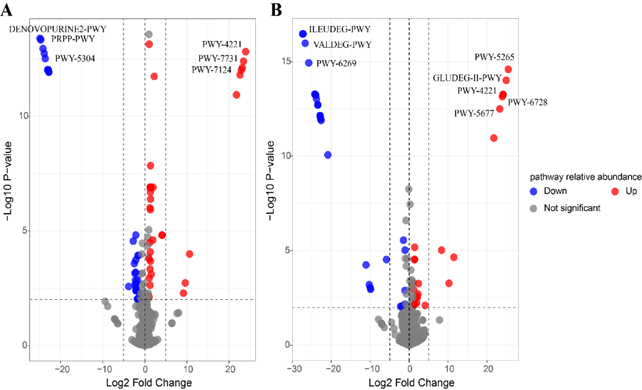
图5 A,4℃富集前后代谢途径丰度差异;B,30℃富集前后代谢途径丰度差异
宏基因组分箱和基因组去重复共获得了133个MAG (图6)。这些基因组主要被分类为变形菌门、放线菌门、厚壁菌门,还包括一个Methanogaster属的古菌,通过METABOLIC软件对这些基因组进行碳、氮和硫代谢循环中关键功能基因的注释。发现Pseudomonadaceae、Alphaproteobacteria和Gammaproteobacteria是甲烷分解代谢的主要参与者,它们通过pmoABC基因将甲烷转化为甲醇。Methanosarcina基因组含有甲烷合成途径不可或缺的mcr基因,该基因也能够反向介导厌氧甲烷氧化。在硫酸盐还原代谢途径程中,Alphaproteobacteria, Gammaproteobacteria,physphaerae和Anaerolineae通过接收来自甲烷氧化过程的电子将硫酸盐转化为硫酸盐和硫化氢。此外,这些微生物可以利用napAB、narGH和nirKS等基因来还原硝酸盐,从而与甲烷氧化相耦合。
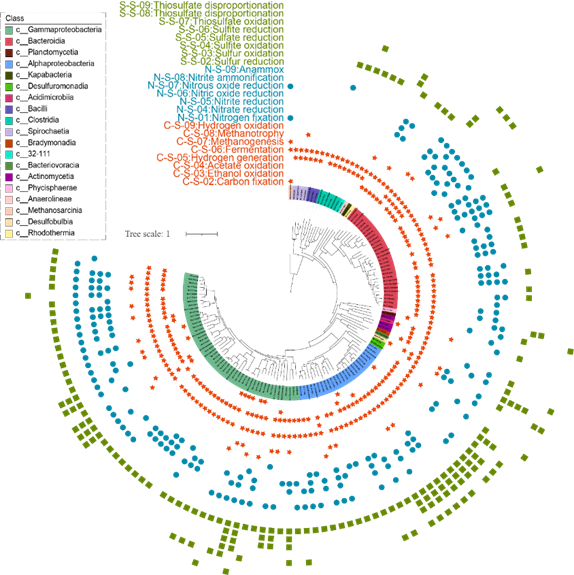
图6 MAG系统发育树及功能基因注释
04 甲烷氧化途径关键基因的相对丰度差异
根据Mcyc甲烷循环数据库,对质控后的序列进行甲烷氧化途径及关键基因的注释。甲烷氧化的主要途径包括在厌氧条件下产生二氧化碳、生成乙酸和生成甲醇,而在好氧条件下生成甲酸途径 (图7)。注释的甲烷代谢基因丰度结果表明,富集前样品与富集第200天收集的样品在甲烷氧化途径方面存在显著差异。与富集前相比,甲烷转化为二氧化碳相关的hdr和fwd基因以及与甲醇形成相关的mta基因在富集200天后丰度降低。相反,与pta和ackA等醋酸形成途径相关的基因丰度显著增加。这些发现表明,在碳酸盐岩表面的微生物初期甲烷氧化主要通过甲基-辅酶M氧化转化为CO2的途径进行,而在富集过程中逐渐地转向形成乙酸的途径转变。
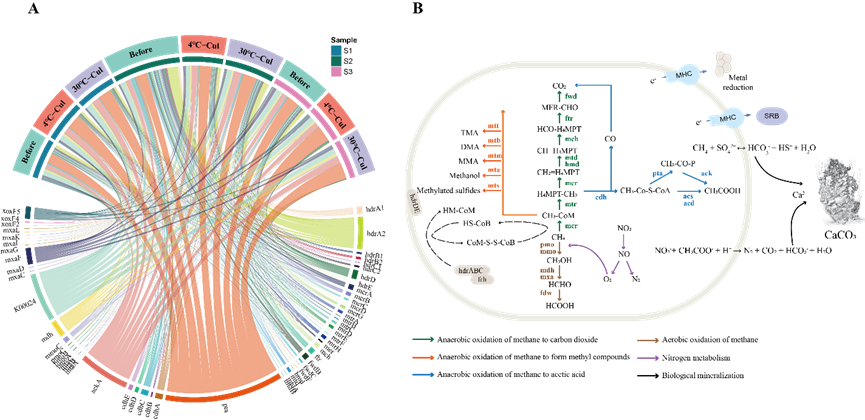
图7 A,不同甲烷代谢途径中关键基因注释;B,不同甲烷代谢途径及碳酸岩成矿作用模式图
甲烷氧化可分为四种途径:AOM氧化为二氧化碳、氧化为甲醛、厌氧条件下氧化为乙酸、好氧条件下氧化为甲醇和C1化合物。综合甲烷消耗速率、微生物群落变化和宏基因组功能丰度分析,确定在初始富集阶段,甲烷氧化代谢的主要途径是anme -2c介导的AOM反应。当甲烷充足时,ANME-2c的甲烷利用率高于其他ANME群。该过程通过硫酸盐还原和硝酸盐还原过程作为电子受体获得能量。MAG功能注释显示,具有硫酸盐还原和硝酸盐还原功能的Alphaproteobacteria、Gammaproteobacteria、physphaerae、Anaerolineae等基团与ANME形成联盟,完成AOM反应。该反应不仅增加了体系的碱度,促进了碳酸盐的析出,而且通过硫酸盐还原和反硝化过程诱导了碳酸盐的析出。
在富集中期,随着甲烷逐渐转化为二氧化碳,ANME-1利用甲烷和二氧化碳作为底物,通过乙酰辅酶A还原途径同化碳。基因组分析表明,ANME-1中存在该通路所需的所有基因。根据前人的研究,甲烷在甲烷氧化古菌的作用下转化为醋酸盐,需要环境中硝酸盐和亚硝酸盐的参与。甲烷氧化古菌生成乙酸的途径与反硝化诱导碳酸盐沉淀的途径之间的竞争导致硝酸盐有效性降低,从而降低了富集中期碳酸盐沉淀的速率。此外,由于封闭体系中生成的乙酸消耗和稀释速度较原位环境慢,因此乙酸的积累会略微降低富集体系的碱度,导致碳酸盐沉淀速度较慢。
在富集后期,由于甲烷的消耗,以及代谢废物和硫化物的积累,ANME群的能量来源减少,进一步减少了ANME在富集系统中的生态位。在这个阶段,能够利用各种形式有机碳源的细菌类群激增。这些不同的细菌群产生胞外酶和有机酸,刺激碳酸盐溶解。然而,通过宏基因组功能分析,我们观察到富集前后碳酸酐酶的丰度增加(图8)。这表明某些微生物上调了碳酸酐酶的表达。碳酸酐酶促进二氧化碳和水转化为碳酸,向环境提供更多的CO32-离子,促进菱镁矿、方解石等矿物的形成。
结论
在碳酸盐岩样品的富集培养过程中,厌氧甲烷氧化微生物的变化和生物矿化过程是复杂的。本研究通过对碳酸盐岩样品的长期培养,结合多种检测方法,对这一复杂过程进行全面研究。主要结论如下:
(1)甲烷浓度和甲烷代谢途径是群落演替的主要驱动因子。微生物种类和功能的动态变化直接影响富集系统中生物矿化过程的动态平衡。
(2) ANME-2c主导的AOM反应与硫酸盐还原和硝酸盐还原过程的耦合促进了碳酸盐的沉淀。而以ANME-1为主的甲烷氧化产乙酸过程则减缓了碳酸盐岩的成矿效率。
(3)在富集培养系统甲烷耗竭后期,细菌菌群的活性对碳酸盐矿化的影响成为一个复杂的动态平衡过程,涉及胞外酶的产生、有机酸途径和碳酸酐酶途径的表达。
原文信息
Cun Li, Jing-Chun Feng, Xiao Chen, Yingli Zhou, Jianzhen Liang, Si Zhang. Behaviours of methane metabolism and community dynamics of methane anaerobic oxidation microbes on carbonate rocks with long-term cultivation in cold seep environment. Applied Energy, 2024, 365, 123296.